
“沉沉夏夜兰堂开,飞蚊伺暗声如雷”。你听到蚊子的嗡嗡声时,意味着你已经被蚊子锁定,成为它的猎物。稍不留意,你的血液就会变成蚊子的盛宴。而你这个可怜的猎物,不仅会瘙痒难耐,还可能成为蚊子携带的病毒或者疟原虫的宿主,失去健康,乃至生命。为什么蚊子能精准锁定你?因为蚊子能够闻到你与众不同的气味。
2026年10月14日,深圳医学科学院生物构造与互作研究所(IBABI)潘孝敬团队联合深圳湾实验室柳峰、黄恺团队,在昆虫化学感受与蚊虫宿主识别机制研究方面取得重要突破。研究团队以疟疾媒介斯氏按蚊(Anopheles stephensi)为研究对象,解析离子型受体(ionotropic receptors,IRs)IR8a–IR75k复合物在多个功能状态下的高分辨率结构,并结合电生理实验、单细胞测序和分子动力学模拟,首次从原子尺度系统揭示昆虫IR复合物如何识别宿主皮肤上的羧酸类气味分子,以及如何将这一化学信号转化为神经电信号的完整机制。相关成果以“Structural basis of ligand recognition and gating in mosquito IRs”为题,在Nature杂志在线发表。
蚊子的“嗅觉导航”:从十米外到皮肤上
蚊子寻找宿主,是一场精密的化学追踪。主要依赖三大类受体体系:味觉受体(gustatory receptors,GRs)、气味受体(odorant receptors,ORs)和离子型受体(ionotropic receptors,IRs)。它们分工协作,使昆虫能够识别二氧化碳、糖类与苦味物质、挥发性气味如羧酸和胺类等多种线索,并驱动宿主寻找等关键行为。其中,羧酸类物质(如壬酸、辛酸)是人体汗液和皮脂中的重要成分,也是蚊子判断“附近有人”的关键线索。
此前研究已知,蚊子的嗅觉系统中离子型受体(Ionotropic Receptors, IRs)在检测羧酸、胺类、湿度和温度等线索中不可或缺。其中,IR8a 是许多IR的“共受体”——它本身不识别气味,但必须与一个“调谐受体”(如IR75k)配对,才能形成有功能的离子通道。IR8a-IR75k复合物正是斯氏按蚊感知中链羧酸的核心装置。然而,这个复合物长什么样?它如何区分不同长度的羧酸?气味结合后,信号又是如何传递到通道并打开离子孔的?这些问题此前一直悬而未决。三大化学感受受体中,IR一直是结构机制研究的“缺失拼图”,特别是在蚊虫中,IR参与识别人类皮肤挥发物中的羧酸,并影响宿主偏好,因此,解析IR的工作机制既是昆虫感觉生物学中的基础问题,也与蚊媒传染病防控密切相关。
本研究首次获得昆虫IR/IR共受体(IRco)复合物的全长高分辨率结构,并进一步捕获其配体诱导的开放状态,从而将气味识别、构象变化、通道开启、信号传递多个环节连接成完整的分子过程,为昆虫三大化学感受受体体系补上了长期缺失的关键机制拼图。
首次看清昆虫IR复合物的全长组装方式
研究团队利用冷冻电镜技术,成功解析了IR8a-IR75k复合物在四种状态下的高分辨率结构:无配体的全长关闭态、壬酸结合的全长开放态,以及壬酸和辛酸分别结合的胞外域结构。结构显示,IR8a-IR75k是一个异源四聚体:两个IR8a构成类似“Y”形的核心支架,两个IR75k分列两侧且彼此不直接接触,提示其可以相对独立地完成配体识别。
这一组装方式与经典脊椎动物离子型谷氨酸受体明显不同,也与此前解析的昆虫OR、GR体系展现出不同的结构组装方式。关闭状态下,复合物跨膜区中央孔道处于收窄状态,为理解IR受体激活前的“门锁”形态提供了直接结构基准。
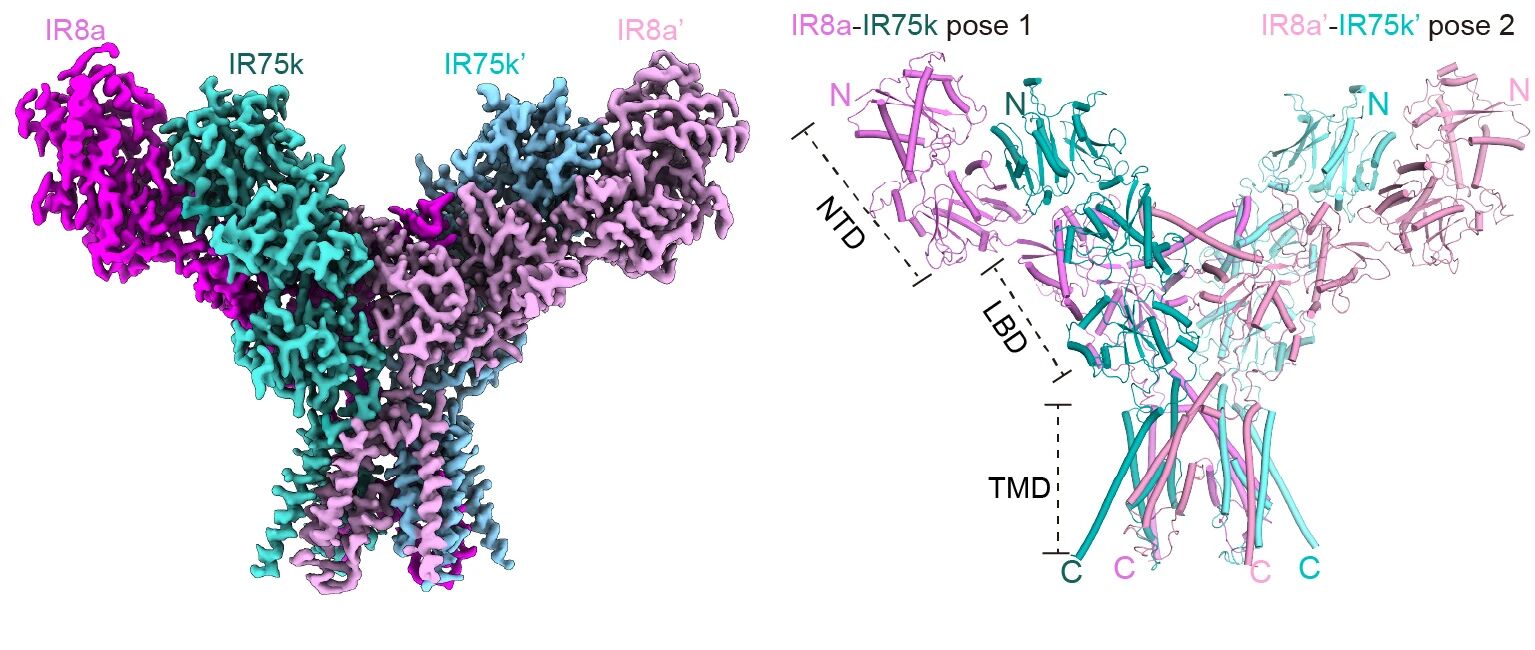
图1|IR8a–IR75k全长异源四聚体结构及关闭态离子通道。该结构揭示了昆虫IR/IRco复合物独特的组装方式。
分子“锁与钥匙”:为什么壬酸比辛酸更“诱蚊”?
为了理解IR如何辨别宿主相关气味的分子机制,研究团队比较了IR8a-IR75k与壬酸(nonanoic acid,NA)和辛酸(octanoic acid,OA)结合时的高分辨率结构。两种分子都是中链羧酸,结构高度相似,仅相差一个亚甲基,但对受体的激活效力明显不同。
结构显示,真正承担配体特异性识别的是IR75k。其配体结合口袋位于双叶状配体结合结构域之间。壬酸的羧酸头部通过氢键网络被精准固定,烷基链则被多个芳香族和疏水残基包围;辛酸由于碳链更短,在口袋中采取更弯曲的结合姿态,氢键和疏水作用随之减弱。也就是说,IR75k不仅识别“羧酸”这一化学类别,还会同时读取烷基链长度和羧基的空间几何,从而区分看起来极其相近的气味分子。
关键残基的突变电生理实验进一步支持了这一结构模型:R323、F318以及多个参与形成芳香疏水环境的残基发生突变后,壬酸诱导的电流显著降低甚至接近消失。研究还发现,这些关键识别位点在多种具有不同宿主偏好的蚊种中高度保守,提示这一核心识别机制具有较强的进化保守性。
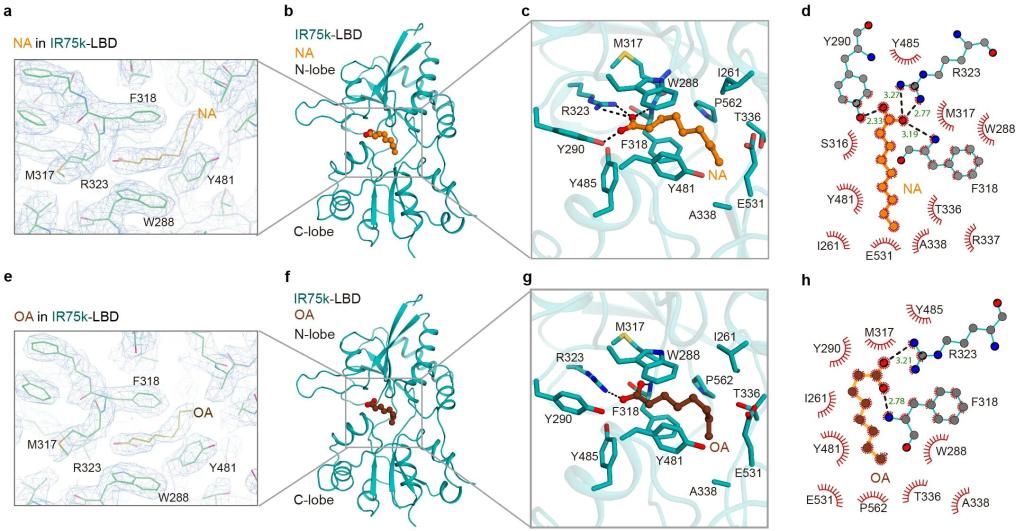
图2|IR75k识别NA和OA的分子基础。配体碳链长度与羧基几何共同决定其在结合口袋中的作用方式。
刚性“分子杠杆”的机械传导,把气味信号传到离子通道
识别气味只是第一步。要形成神经信号,受体还必须把胞外的化学事件转化为跨膜离子流。研究团队经过了长达一年的时间,进一步解析了3.33 Å分辨率的壬酸结合的开放态结构,并与无配体关闭态进行比较,从而直接看清了IR8a-IR75k由“闻到气味”到“打开通道”的结构变化。
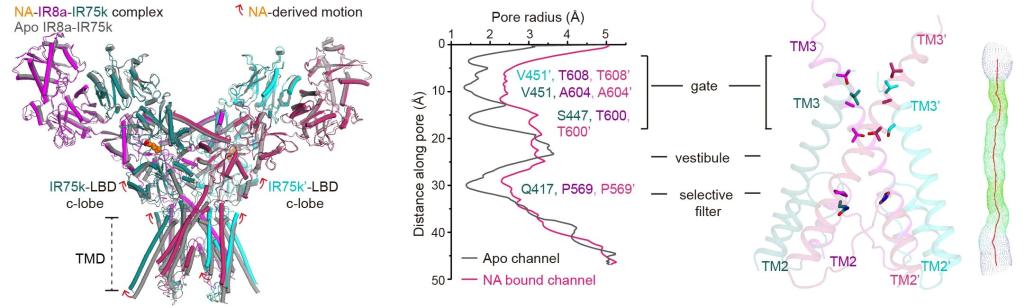
图3|结构比较显示,NA结合伴随配体结合结构域重排和孔道扩张。
壬酸进入IR75k结合口袋后,双叶状配体结合结构域发生闭合,其中C叶以近似刚体方式旋转。这个动作通过A344、K460、C603等保守机械连接位点继续向跨膜区(离子通道结构域)传递。尤其值得注意的是,K460与跨膜区之间的短连接结构只有四个氨基酸,却像一根刚性的“分子杠杆”:配体结合引发的上部结构运动经由这段连接结构被放大并传递,牵拉跨膜螺旋向外移和转动,最终使中央孔道扩张并进入开放状态。
为验证这一“分子杠杆”模型,研究人员在关键连接位置插入柔性的GSGS序列,相当于给刚性传动结构加上一个“减震器”,结果配体结合与通道开启之间的信号耦联几乎被切断。全原子分子动力学模拟进一步显示,在相同条件下,壬酸结合开放态能够允许钠离子快速通过,而无配体关闭态则没有观察到相应的阳离子通透过程。结构、功能和计算结果由此共同建立了“配体进入口袋—结合结构域闭合—机械连接传力—跨膜螺旋外移—孔道开放”的连续机制。
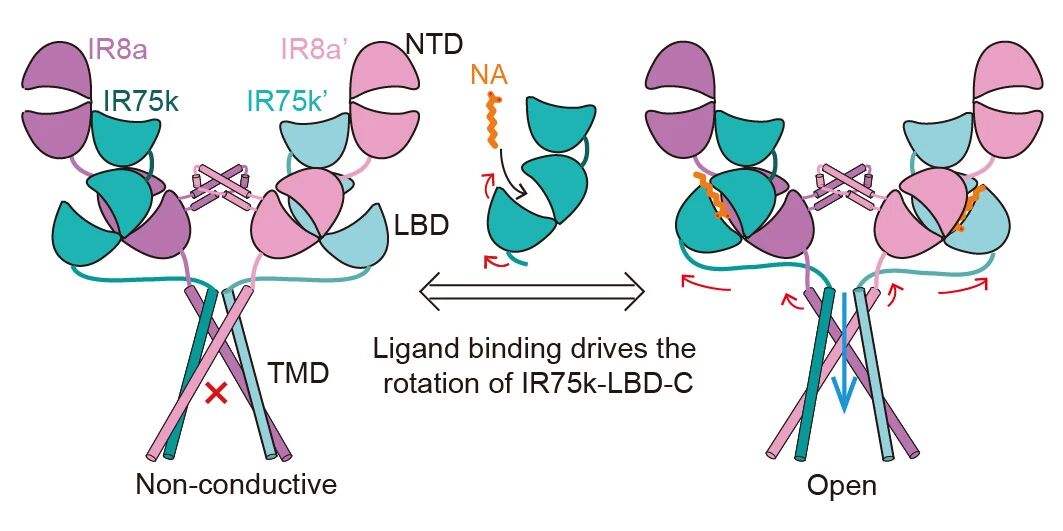
图4|IR8a–IR75k的配体门控机制。IR75k配体结合结构域的闭合通过短机械连接区传递至跨膜螺旋,最终驱动离子通道开放。
进化与应用的启示:从补齐基础机制,到寻找精准防蚊的新靶点
这项工作的核心意义首先在于基础科学层面。过去,昆虫OR和GR已经有代表性的结构与机制研究,而IR复合物的全长结构及配体门控过程始终缺少关键证据。本研究首次建立昆虫IR复合物从配体识别到通道开启的完整结构机制,使人们能够在同一原子尺度框架下理解昆虫三大化学感受受体体系的异同。
这一发现也为理解蚊虫如何利用宿主气味找到人提供了新的分子解释。蚊虫的宿主寻找行为与疟疾等蚊媒传染病传播密切相关。研究揭示的IR75k配体结合口袋、关键识别残基和机械连接位点,为后续开展基于结构的驱避剂、引诱剂或受体调控分子设计提供了潜在靶点。未来,若能够针对这些关键结构精准干预蚊虫嗅觉信号,则有望实现更加绿色、精准的蚊媒防控策略。
论文信息
深圳医学科学院特聘研究员潘孝敬、深圳湾实验室特聘研究员柳峰、黄恺为本文的共同通讯作者。深圳医学科学院副研究员徐莉、深圳湾实验室博士后王鑫以及深圳湾实验室助理研究员全学波为本文的共同第一作者。深圳湾实验室助理研究员Stephen T Ferguson,深圳医科院博士生刘东,陈嘉伟,西湖大学博士后王赛,深圳湾实验室科研助理梁思敏以及西湖大学特聘研究员黄高兴宇为本研究提供了重要帮助。深圳医学科学院生物结构解析平台,电生理平台及高性能计算平台为本研究提供了关键技术支撑。本研究得到了国家科技部、国家自然科学基金、深圳市青年杰出科技创新人才培养项目、深圳湾实验室重大项目(培育)的经费的支持。
论文链接:
DOI: 10.1038/s41586-026-11239-3
URL: https://www.nature.com/articles/s41586-026-11239-3
文章来源 | 生物构造与互作研究所


 粤公网安备44031102000926号